蛋白在哪里?空间蛋白质组学为什么成为年度热点
系列第七篇
前六篇我们追问的是:能不能测到更多蛋白、能不能稳定定量、能不能一次测很多样本、能不能测很少的样本、能不能看到蛋白修饰和 proteoform。
这一篇继续追问另一个关键问题:蛋白在哪里?
本文导读
在生命系统里,位置从来不是背景信息。
同一个蛋白出现在细胞核、细胞膜、线粒体或细胞外基质,意义可能完全不同。同一种免疫细胞靠近肿瘤细胞,还是被隔离在肿瘤边缘,可能决定免疫治疗是否有效。同一个肿瘤组织里,侵袭前沿、缺氧区域、坏死区、血管周围和免疫浸润区,可能代表完全不同的生物学状态。
传统蛋白质组学常常把组织打碎,得到的是一个“平均蛋白质组”。这个平均值有用,但它也会抹掉空间差异。空间蛋白质组学要解决的,就是这个问题:
不仅知道有哪些蛋白、蛋白有多少,还要知道它们在组织里的具体位置和空间关系。
2024 年,Nature Methods 将 spatial proteomics 评为 Method of the Year,认为这类方法正在帮助研究者理解复杂组织在健康和疾病中的空间组织方式,并支撑组织图谱级项目的发展。[1]
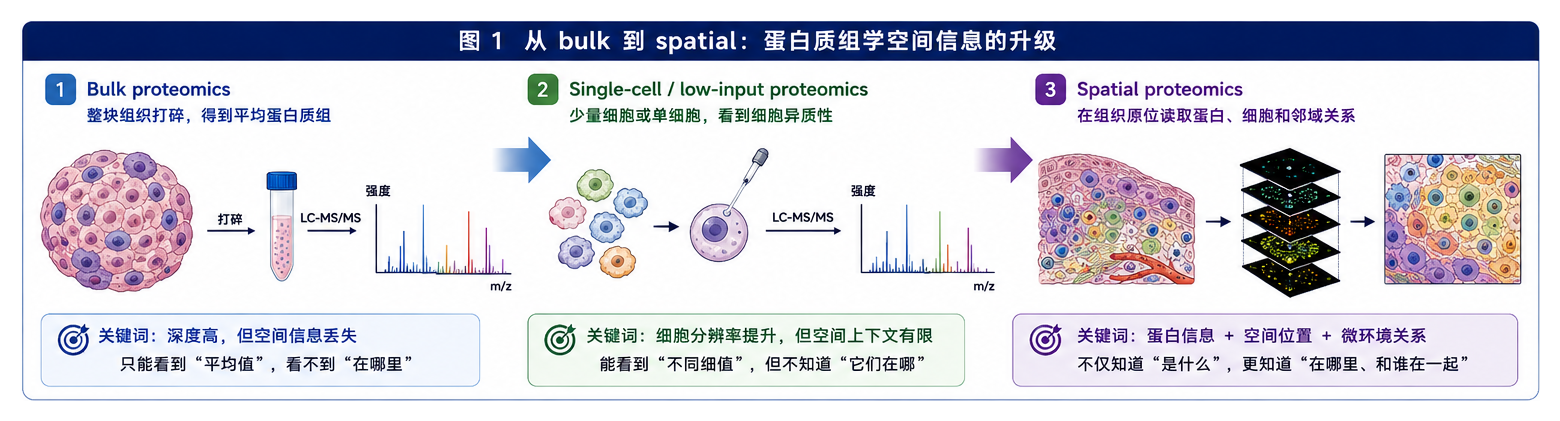
图 1|从 bulk 到 spatial:蛋白质组学空间信息的升级
从“平均值”到“组织现场”:蛋白在哪里,和蛋白有多少同样重要。
一、为什么“位置”会改变蛋白质组学的意义?
想象一张肿瘤切片。
如果把整块组织磨碎做蛋白质组学,我们可能会得到这样的结果:
- 炎症相关蛋白升高;
- 代谢相关蛋白改变;
- 细胞外基质相关蛋白增加;
- 免疫检查点蛋白表达上升。
这些信息当然重要,但它们还不够。
因为我们不知道这些信号来自哪里。
炎症蛋白是来自肿瘤中心,还是肿瘤边缘?免疫细胞是进入了肿瘤内部,还是只停留在外周?细胞外基质是形成了屏障,还是参与了侵袭前沿重塑?药物响应相关蛋白是所有肿瘤细胞都变化,还是只在某一小群耐药细胞中变化?
空间信息一旦被保留下来,蛋白质组学就不再只是“分子清单”,而变成了组织结构、细胞状态和微环境关系的读数。
这也是为什么空间组学在肿瘤、免疫、神经、发育和临床病理中快速升温。单细胞测序可以揭示细胞异质性,但很多单细胞方法会在组织解离过程中丢失位置信息;空间技术则试图保留“谁和谁在一起、谁靠近谁、谁被排斥在外”的信息。Nature Methods 对空间蛋白质组学的年度方法报道也特别强调,这类技术的价值不仅在于“看见蛋白”,更在于揭示复杂组织的空间组织方式。[1]
二、空间蛋白质组学不是一种技术,而是一组技术
空间蛋白质组学并不是某一台仪器或某一个试剂盒。
它更像一个技术家族:目标都是在组织或细胞原位读取蛋白信息,但实现路线不同。
大致可以分成四类:
| 技术路线 | 代表方法 | 主要特点 | 适合回答的问题 |
|---|---|---|---|
| 多重抗体成像 | CODEX、cycIF、IMC、MIBI、IBEX、DSP | 用抗体识别预设蛋白,保留单细胞或亚细胞空间位置 | 哪些细胞类型在哪里,细胞邻域关系如何 |
| 空间质谱 / 质谱成像 | MALDI-MSI、MSI-guided proteomics | 不完全依赖抗体,可在组织上直接读取多类分子空间分布 | 分子在组织中的空间分布如何 |
| 图像引导深度质谱 | Deep Visual Proteomics, LCM-MS | 先成像识别目标区域或细胞,再显微切割做深度 LC-MS/MS | 某个形态区域或细胞群的深度蛋白质组是什么 |
| 微流控 + AI 重构型空间蛋白组 | PLATO / Flow2Spatial | 用微流控获得组织蛋白质组投影,再用迁移学习重建整张切片的蛋白空间图谱 | 如何在整组织尺度重建上千蛋白的高分辨率空间分布 |
Nature Methods 将空间蛋白质组学称为一个 umbrella term,覆盖 cycIF、CODEX、IBEX、MIBI、IMC 等免疫成像路线,同时也关注 DVP 这类通过质谱获得更深蛋白覆盖的新方法。[1]
所以,这一篇要先纠正一个误解:
空间蛋白质组学不等于“空间质谱”,也不等于“多重免疫荧光”。
抗体成像路线更擅长在原位看细胞类型、细胞状态和细胞邻域;质谱成像路线更擅长在组织上直接读取多类分子空间分布;DVP 这类图像引导质谱路线更擅长把形态学区域和深度蛋白质组连接起来;PLATO 则进一步尝试用微流控和 AI,在整张组织切片尺度重建高分辨率蛋白空间图谱。
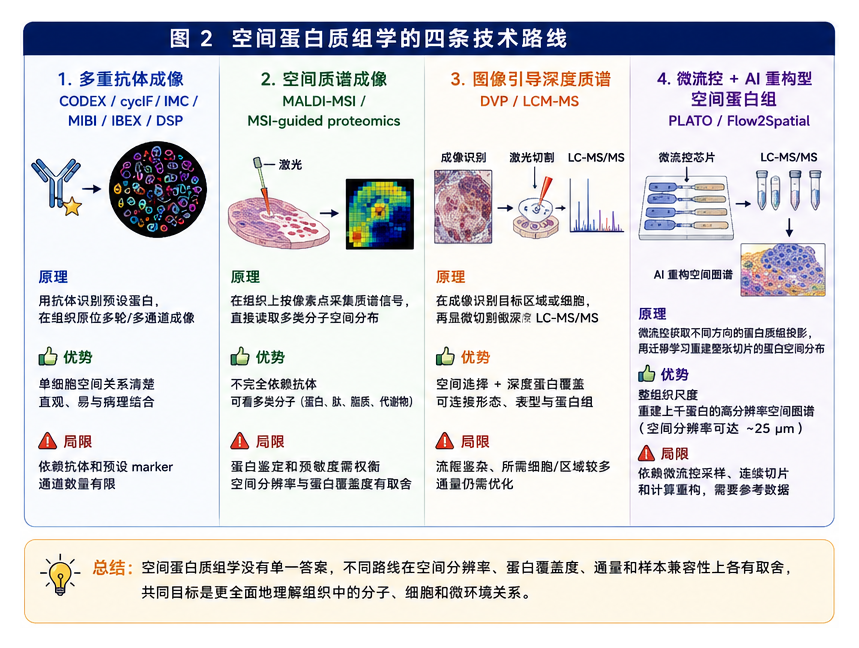
图 2|空间蛋白质组学的四条技术路线
空间蛋白质组学没有单一答案,不同路线解决不同尺度的问题。
三、第一条路线:多重抗体成像,把组织切片变成细胞地图
最容易理解的一类空间蛋白质组学,是多重抗体成像。
传统免疫组化或免疫荧光通常只能看少数几个 marker。比如病理诊断中常看 Ki-67、CD3、PD-L1、HER2 等,但这类低通量 marker 很难完整刻画组织中的细胞类型和状态。
多重抗体成像要做的,是在同一张组织切片上同时检测几十个蛋白 marker。
比如:
- 肿瘤细胞 marker;
- T 细胞、B 细胞、巨噬细胞、成纤维细胞 marker;
- 免疫检查点 marker;
- 增殖、凋亡、缺氧、代谢、信号通路 marker;
- 细胞核、细胞膜、细胞器或细胞外基质 marker。
这样,一张切片就可以从“彩色病理图像”变成“单细胞空间图谱”。
CODEX 是这一类方法中的代表。CODEX 依赖 DNA 偶联抗体和循环加入 / 去除荧光 DNA 探针的方式进行多轮成像,Nature Protocols 文章介绍该方法已用于在原位同时可视化最多约 60 个 marker,并可用于 FFPE 和新鲜冰冻组织。[2]
IMC 和 MIBI 则使用金属同位素标记抗体,避免传统荧光染料的光谱重叠问题。IMC 早在 2014 年就展示了在肿瘤组织中进行高维、亚细胞分辨率成像的能力;当时的 Nature Methods 论文报道了同时成像 32 个蛋白和蛋白修饰,并用于分析人乳腺癌样本中的细胞亚群、细胞互作和肿瘤异质性。[3]
这类方法的核心优势是:
它们能在组织原位,以接近单细胞甚至亚细胞分辨率,看见细胞类型、蛋白表达和细胞之间的空间关系。
但它们也有明显限制:
- 抗体必须可靠;
- marker 必须预先设计;
- 通道数量仍然有限;
- 数据分析高度依赖图像分割和细胞注释;
- 不同批次、不同抗体、不同组织处理方式会影响可比性。
所以,多重抗体成像很适合回答“哪些细胞在哪里”,但不一定适合回答“全蛋白质组发生了什么”。
四、第二条路线:空间质谱,让分子分布直接呈现在组织上
另一类路线是空间质谱,尤其是 mass spectrometry imaging,也就是质谱成像。
这类方法的直觉很简单:在组织切片上按像素点采集质谱信号,然后把分子的空间分布画出来。
MALDI-MSI 是最常见的空间质谱路线之一。它可以在组织上直接检测多类分子,包括代谢物、脂质、糖链、肽段和部分蛋白,并生成分子空间分布图。2024 年 npj Imaging 综述指出,MSI 是空间解析多组学分子图谱的重要技术,可用于在组织和细胞样本中空间定位代谢组、脂质组和蛋白质组信息。[4]
空间质谱的优势是:
- 不完全依赖抗体;
- 可以看多种分子类型;
- 适合发现组织区域中的分子梯度;
- 可以和病理图像、免疫染色、多组学数据结合。
但对于蛋白质组学来说,它也有挑战:
- 蛋白鉴定不如 LC-MS/MS 直接;
- 空间分辨率、蛋白覆盖度和灵敏度之间需要权衡;
- 复杂组织中不同分子可能共定位或信号重叠;
- 如果要做深度蛋白鉴定,常常需要和显微切割、LC-MS/MS 或其他方法结合。
所以,空间质谱像是在组织上直接画分子地图;多重抗体成像像是在组织上画细胞和 marker 地图。两者结合,才更接近完整的空间生命状态图谱。
五、第三条路线:Deep Visual Proteomics,把“看见的细胞”拿去做深度质谱
空间蛋白质组学真正让质谱研究者兴奋的一条路线,是 Deep Visual Proteomics,简称 DVP。
它的思路非常有代表性:
- 先用显微成像看组织;
- 再用 AI 分析图像,识别细胞形态和空间区域;
- 然后用激光显微切割选取目标细胞或区域;
- 最后用高灵敏 LC-MS/MS 做深度蛋白质组分析。
这样做的好处是:既保留了空间和形态信息,又能获得比抗体成像更深的蛋白质组覆盖。
2022 年 Nature Biotechnology 发表的 DVP 工作,将 AI 驱动的图像分析、自动化单细胞或单核激光显微切割和超高灵敏质谱结合起来,从而把蛋白丰度和细胞 / 亚细胞表型连接起来,同时保留空间上下文;该研究还在 archived primary melanoma tissue 中分析了正常黑色素细胞向侵袭性黑色素瘤转变过程中的空间蛋白质组变化。[5]
这类方法非常适合回答传统 bulk proteomics 难以回答的问题:
- 某个肿瘤侵袭前沿的蛋白质组是什么?
- 正常组织到癌变组织的过渡区域发生了什么?
- 形态上看起来相似的细胞,蛋白质组是否不同?
- 空间上相邻但功能不同的细胞群,有哪些通路差异?
DVP 的意义在于,它把“图像中的空间结构”转化成“质谱中的深度蛋白信息”。
但它也不是万能的。DVP 对样本处理、图像分割、激光切割、低输入质谱和数据分析要求都很高,通量也仍然是需要持续优化的问题。
六、第四条路线:PLATO,用微流控和 AI 重建整张组织的蛋白空间图谱
除了抗体成像、质谱成像和显微切割质谱,近年还出现了一类更工程化的空间蛋白质组学路线:
用微流控采样结合 AI 重构整张组织的蛋白空间图谱。
PLATO 就是这一方向的代表。
PLATO 的全称是 Parallel-flow Projection and Transfer Learning Across Omics Data。它的核心思想不是在组织切片上逐点做 LC-MS/MS,而是利用微流控通道从不同方向获得组织蛋白质组的“投影”信息,再结合组织染色或其他空间组学参考数据,通过迁移学习重建整张切片中蛋白的空间分布。Cell 论文将 PLATO 描述为一个整合微流控与深度学习的空间蛋白质组学框架,目标是在整张组织切片中实现上千蛋白的高分辨率空间图谱分析。[6]
这听起来有点抽象,可以打个比方。
传统 LC-MS/MS 像是把组织某个区域“取下来测”。DVP 像是“先看图,再把目标细胞或区域切下来测”。PLATO 更像是“从不同方向扫描组织,得到蛋白质组投影,再用 AI 还原整张组织地图”。
PLATO 的流程大致可以理解为四步:
- 连续切取组织切片;
- 中间切片用于 H&E 染色或空间组学参考;
- 前后相邻切片放入微流控芯片,从不同角度进行 parallel-flow proteomic profiling;
- 收集通道中的肽段做 LC-MS/MS,再用 Flow2Spatial 算法重建蛋白空间分布。
PLATO 论文中报道,该框架在小鼠小脑中单次运行识别 2,564 个 protein groups,并应用于大鼠肠绒毛和人乳腺癌样本,空间分辨率达到约 25 μm;在人乳腺癌样本中,PLATO 还用于识别空间上不同的肿瘤亚型和异常调控蛋白。[6]
PLATO 的计算部分 Flow2Spatial 也已公开,其说明中明确写到,Flow2Spatial 是 PLATO 的计算部分,用于从 parallel-flow projections 中重建 spatial proteomics 数据,并通过迁移学习恢复不同组织类型中蛋白空间分布的精细结构。[7]
PLATO 的出现说明,空间蛋白质组学正在出现一个新方向:
不是只在组织上“拍蛋白”,也不是只切几个 ROI 做深度质谱,而是尝试用有限的质谱测量,重建整张组织的深度蛋白空间图谱。
它当然也有挑战。PLATO 依赖微流控芯片、连续切片、参考空间信息和计算重构,流程复杂度较高;重构结果也需要与组织结构、抗体成像、空间转录组或其他验证方式相互校验。但作为一种新路线,它很好地补上了空间蛋白质组学长期存在的一个空白:
如何在整组织尺度同时获得较深蛋白覆盖和较高空间分辨率。
如果说多重抗体成像强调“原位单细胞 marker 图谱”,DVP 强调“图像选择区域后的深度质谱”,那么 PLATO 强调的是:
整张组织切片的深度空间蛋白图谱重建。
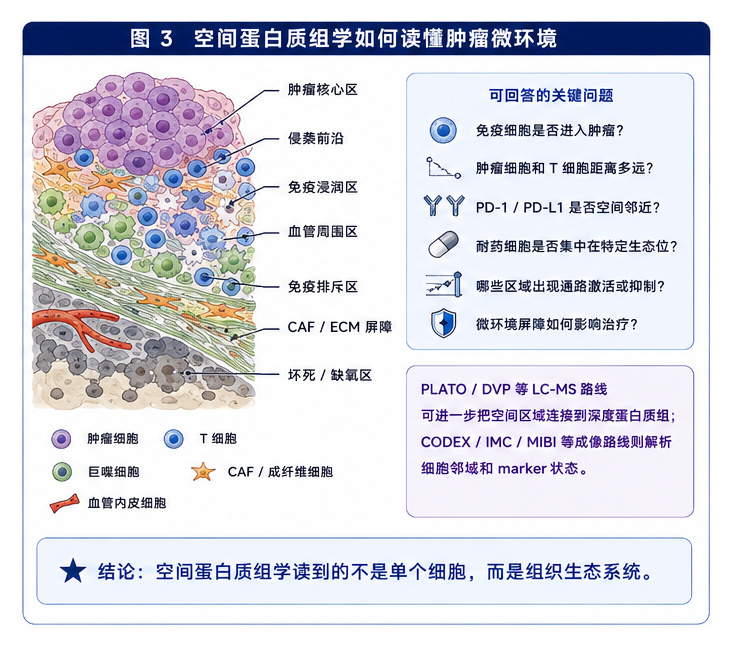
图 3|空间蛋白质组学如何读懂肿瘤微环境
空间蛋白质组学读到的不是单个细胞,而是组织生态系统。
七、空间蛋白质组学真正读到的,不只是位置,而是“关系”
空间信息最有价值的地方,不只是告诉我们某个蛋白在哪里,而是告诉我们分子、细胞和组织结构之间的关系。
比如在肿瘤中,空间蛋白质组学可以分析:
- T 细胞是否进入肿瘤内部;
- 巨噬细胞是否包围肿瘤细胞;
- PD-1 阳性 T 细胞是否靠近 PD-L1 阳性肿瘤细胞;
- CAF 是否形成物理屏障;
- 血管周围是否存在特定免疫细胞生态位;
- 耐药细胞是否集中在缺氧区域。
这些关系不能从 bulk 蛋白质组学中直接看出来,也很难从单细胞 RNA-seq 中完整恢复。
这也是为什么空间蛋白质组学特别适合肿瘤研究。
肿瘤不是一团均一细胞,而是由癌细胞、免疫细胞、基质细胞、血管、神经、细胞外基质和局部代谢环境共同构成的生态系统。空间蛋白质组学要做的,就是把这个生态系统画出来。
Nature Methods 年度方法报道中也提到,空间蛋白质组学已经深刻影响癌症研究,让研究者能够从组织结构、细胞互作和免疫系统如何与肿瘤相互作用等角度理解肿瘤。[1]
八、空间蛋白质组学为什么在 2024 年成为年度方法?
空间蛋白质组学不是突然出现的。免疫荧光、免疫组化和组织成像已经有很长历史。那为什么它在 2024 年成为年度方法?
可以总结为五个原因。
1. 多重成像成熟了
过去一张切片只能看几个 marker,现在 CODEX、cycIF、IMC、MIBI 等方法可以在单张组织切片上检测几十个蛋白 marker。这让组织从“少数 marker 验证”走向“高维空间图谱”。[1]
2. 低输入质谱变强了
前一篇我们讲过,低输入和单细胞蛋白质组学让少量细胞、微区组织和激光显微切割样本变得可测。DVP 正是受益于这条技术主线,它可以把形态学选择和深度质谱连接起来。[5]
3. AI 图像分析进入核心流程
空间数据不是普通表格,而是高维图像和空间坐标。细胞分割、细胞分类、邻域分析、组织区域识别、空间网络构建都离不开计算方法。CyLinter 这类工具的出现也说明,高复用组织图像需要系统的质量控制,因为组织图像会受到褶皱、碎屑、抗体聚集、光学畸变和图像处理错误等影响。[10]
4. 大型图谱项目推动标准化
HuBMAP、HTAN 等大型组织图谱项目推动了空间技术从单个实验室走向数据资源和标准化建设。Nature Methods 的年度方法文章特别提到,空间蛋白质组学正在支撑 HuBMAP 和 HTAN 等 atlas-scale 项目。[1]
5. 数据库和公共资源开始积累
scProAtlas 是一个典型例子。该数据库整合了 8 类空间蛋白成像技术、15 种人体组织、945 个 ROI 和 17,468,394 个细胞的数据,并提供邻域分析、空间邻近分析、细胞互作和空间通路分析等功能。[9]
这些因素合在一起,说明空间蛋白质组学已经不再只是“漂亮图片”,而是在走向可分析、可比较、可积累的空间数据科学。
九、空间蛋白质组学和病理学的关系:从“看形态”到“看分子生态”
空间蛋白质组学和病理学天然接近。
病理医生看组织切片,本质上也是在读取空间信息:细胞形态、组织结构、浸润边界、坏死区域、腺体结构、免疫细胞分布。
空间蛋白质组学并不是要替代病理学,而是给病理图像增加分子层。
| 层次 | 读到的信息 |
|---|---|
| 传统病理 | 组织形态和结构 |
| 免疫组化 | 少数 marker |
| 空间蛋白质组学 | 几十个甚至更多 marker 的空间组合 |
| DVP / PLATO / 空间质谱 | 组织区域与深度蛋白质组连接 |
这样,病理切片就可能从“形态诊断图像”变成“空间分子图谱”。
这对临床有很大潜力。比如:
- 判断肿瘤免疫微环境类型;
- 预测免疫治疗响应;
- 识别耐药生态位;
- 发现侵袭前沿的分子特征;
- 在 FFPE 档案样本中重建疾病进展过程。
GeoMx Digital Spatial Profiling 是临床样本空间 profiling 中常被提到的技术之一。2020 年 Nature Biotechnology 论文介绍,DSP 可以在 FFPE 样本上对蛋白或 RNA 进行高度多重空间 profiling,并通过光切割释放 ROI 中的寡核苷酸标签;其 ROI 可覆盖约 1 到 5000 个细胞,并展示了蛋白和 RNA 的多重检测能力。[8]
这类技术的意义在于:它们让临床病理样本进入空间多组学分析成为可能。
十、空间蛋白质组学的核心指标:不是只有“测了多少蛋白”
写空间蛋白质组学时,不能只问“测了多少蛋白”。
更合理的评价维度包括:
| 维度 | 关键问题 |
|---|---|
| 空间分辨率 | 是组织区域级、单细胞级,还是亚细胞级? |
| 蛋白覆盖度 | 是几十个 marker,还是几千个蛋白? |
| 是否靶向 | 依赖预设抗体,还是更接近无偏质谱? |
| 样本兼容性 | 能否用于 FFPE、冰冻组织、临床档案样本? |
| 通量 | 一次能处理多少切片、多少 ROI、多少细胞? |
| 定量准确性 | 信号是否可比较,批次是否可控? |
| 计算分析 | 是否能做细胞分割、邻域、互作和空间统计? |
不同技术在这些维度上取舍不同。
- 抗体成像的空间分辨率高,单细胞结构清楚,但 marker 数量有限、依赖抗体。
- 空间质谱更少依赖抗体,能看更多分子类型,但蛋白鉴定和空间分辨率需要权衡。
- DVP 可以获得较深蛋白覆盖,但通量和流程复杂度仍是挑战。
- DSP 适合 ROI 级空间 profiling,但与真正单细胞成像相比,空间粒度不同。
- PLATO 尝试在整组织尺度重建深度空间蛋白图谱,但依赖微流控采样、连续切片和计算重构。
所以,空间蛋白质组学没有“万能方法”,只有适合问题的方法。
十一、空间蛋白质组学的下一个方向:亚细胞、三维和多组学整合
空间蛋白质组学现在已经能看组织区域和单细胞邻域,但未来会继续向三个方向发展。
1. 亚细胞空间蛋白质组学
蛋白在哪里,不仅指在哪个细胞,也指在细胞内哪个结构。
细胞核、线粒体、溶酶体、内质网、膜表面、细胞骨架、纤毛等亚细胞结构都可能决定蛋白功能。Nature Methods 在 2024 年 Methods to Watch 中专门提到 subcellular spatial proteomics,认为多重超分辨显微技术会推动空间蛋白质组学进入下一阶段。[11]
2. 三维空间蛋白质组学
组织不是二维切片,而是三维结构。
一张切片只能提供一个平面,三维重建才能更真实地描述细胞网络、血管结构、神经连接和肿瘤浸润模式。三维 IMC 等方法已经开始把高维分子成像从二维组织切片推进到三维组织结构中,用于分析组织和肿瘤微环境的细胞与分子分布。[12]
3. 空间多组学整合
单独看蛋白很重要,但组织状态还包括 DNA、RNA、表观组、代谢物、脂质和细胞形态。
未来的空间分析很可能不是“空间蛋白质组学单打独斗”,而是:
- 空间蛋白 + 空间转录组;
- 空间蛋白 + 代谢物 / 脂质;
- 空间蛋白 + 病理图像;
- 空间蛋白 + 单细胞测序;
- 空间蛋白 + AI 组织结构模型。
PLATO 本身就体现了这种趋势:它不仅依赖质谱测量,也依赖组织染色或其他空间组学参考数据,再通过迁移学习进行重构。[6]
这会把蛋白质组学从“分子层”推进到“组织生态层”。
十二、空间蛋白质组学目前还有哪些挑战?
这篇文章不能只写热度,也要写挑战。
1. 抗体和 marker 设计
多重抗体成像依赖高质量抗体。抗体特异性、批次稳定性、交叉反应、信号强弱都会影响结果。marker panel 设计也很关键:选错 marker,就会错过关键细胞状态。
2. 空间分辨率与覆盖度的取舍
高分辨率成像可以看得很细,但通常 marker 数有限。深度 LC-MS 可以测更多蛋白,但空间位置需要通过切割、ROI 或其他方式保留。空间质谱则要在像素大小、灵敏度和鉴定深度之间平衡。
3. 图像分割和细胞注释
空间数据的第一步常常是把每个细胞分出来。但组织中细胞形态复杂,细胞重叠、切片厚度、染色质量、坏死区域和组织折叠都会影响分割结果。CyLinter 的研究明确指出,高复用组织图像会有褶皱、碎屑、抗体聚集、光学畸变和图像处理错误等多类伪影,因此需要系统 QC。[10]
4. 统计和解释
空间数据不是普通独立样本。一个细胞的状态会受到邻近细胞、局部结构和组织区域影响。如何定义邻域、如何判断空间共定位是否显著、如何控制多重检验、如何把空间模式转化成机制假说,都是难点。
5. 跨平台整合
CODEX、IMC、MIBI、DSP、DVP、PLATO、MALDI-MSI、空间转录组等技术的数据结构完全不同。不同平台之间如何对齐、归一化、互相验证,是空间组学走向临床和大图谱必须解决的问题。
所以,空间蛋白质组学不是“拍一张高维彩色图”就结束了。真正的价值在于把图像、蛋白、空间统计和生物学机制连起来。
十三、这一篇的核心结论:蛋白质组学正在进入组织现场
如果用一句话总结第七篇:
空间蛋白质组学让蛋白质组学从“样本平均值”,走向“组织现场读数”。
传统 bulk proteomics 告诉我们一个样本整体有哪些蛋白。单细胞蛋白质组学告诉我们不同细胞之间有什么差异。修饰组学告诉我们蛋白处于什么功能状态。空间蛋白质组学则进一步告诉我们:这些蛋白状态发生在组织的哪里,哪些细胞彼此相邻,哪些微环境正在形成。
这一步非常重要。
因为真实生命状态不是漂浮在试管里的分子清单,而是发生在组织结构中的空间事件。
- 肿瘤如何侵袭;
- 免疫细胞如何被招募或排斥;
- 药物如何进入组织;
- 细胞如何在发育中形成结构;
- 炎症如何沿着组织边界扩散;
- 疾病如何从局部区域开始改变整个器官。
这些问题都离不开空间。
过去十年,蛋白质组学变得更快、更深、更稳、更小;现在,它又开始变得更“有位置”。
从 CODEX、IMC、MIBI 到 DSP,从 MALDI-MSI 到 DVP,再到 PLATO 这样的微流控 + AI 重构路线,空间蛋白质组学正在不断扩展“蛋白在哪里”这个问题的答案。
下一篇,我们继续从空间进入机制:
蛋白质组学不只做清单:结构、互作和机制解析的新工具箱。
参考文献线索
- Nature Methods, 2024. Spatial proteomics was selected as Method of the Year 2024. https://www.nature.com/articles/s41592-024-02565-3
- CODEX Nature Protocols. CODEX multiplexed tissue protein imaging with DNA-conjugated antibodies and cyclic imaging. https://www.nature.com/articles/s41596-021-00556-8
- Giesen et al., Nature Methods, 2014. Highly multiplexed imaging of tumor tissues with subcellular resolution by mass cytometry. https://www.nature.com/articles/nmeth.2869
- npj Imaging, 2024. Mass spectrometry imaging for spatially resolved molecular omics. https://www.nature.com/articles/s44303-024-00025-3
- Mund et al., Nature Biotechnology, 2022. Deep Visual Proteomics defines single-cell identity and heterogeneity. https://www.nature.com/articles/s41587-022-01302-5
- PLATO, Cell, 2025. Parallel-flow projection and transfer learning across omics data for high-resolution spatial proteomics. https://pubmed.ncbi.nlm.nih.gov/39855194/
- Flow2Spatial GitHub. Computational reconstruction for PLATO spatial proteomics data. https://github.com/bioinfo-biols/Flow2Spatial
- Merritt et al., Nature Biotechnology, 2020. Multiplex digital spatial profiling of proteins and RNA in FFPE tissue. https://www.nature.com/articles/s41587-020-0472-9
- scProAtlas, Nucleic Acids Research, 2025. A spatial proteomics atlas integrating multiple imaging technologies and human tissues. https://academic.oup.com/nar/article/53/D1/D582/7889253
- CyLinter, Nature Methods, 2024. Quality control for highly multiplexed tissue images. https://www.nature.com/articles/s41592-024-02328-0
- Nature Methods, 2024. Methods to Watch 2024: subcellular spatial proteomics. https://www.nature.com/articles/s41592-024-02546-6
- Nature Cancer, 2022. Three-dimensional imaging mass cytometry for spatial tissue analysis. https://www.nature.com/articles/s43018-021-00301-w